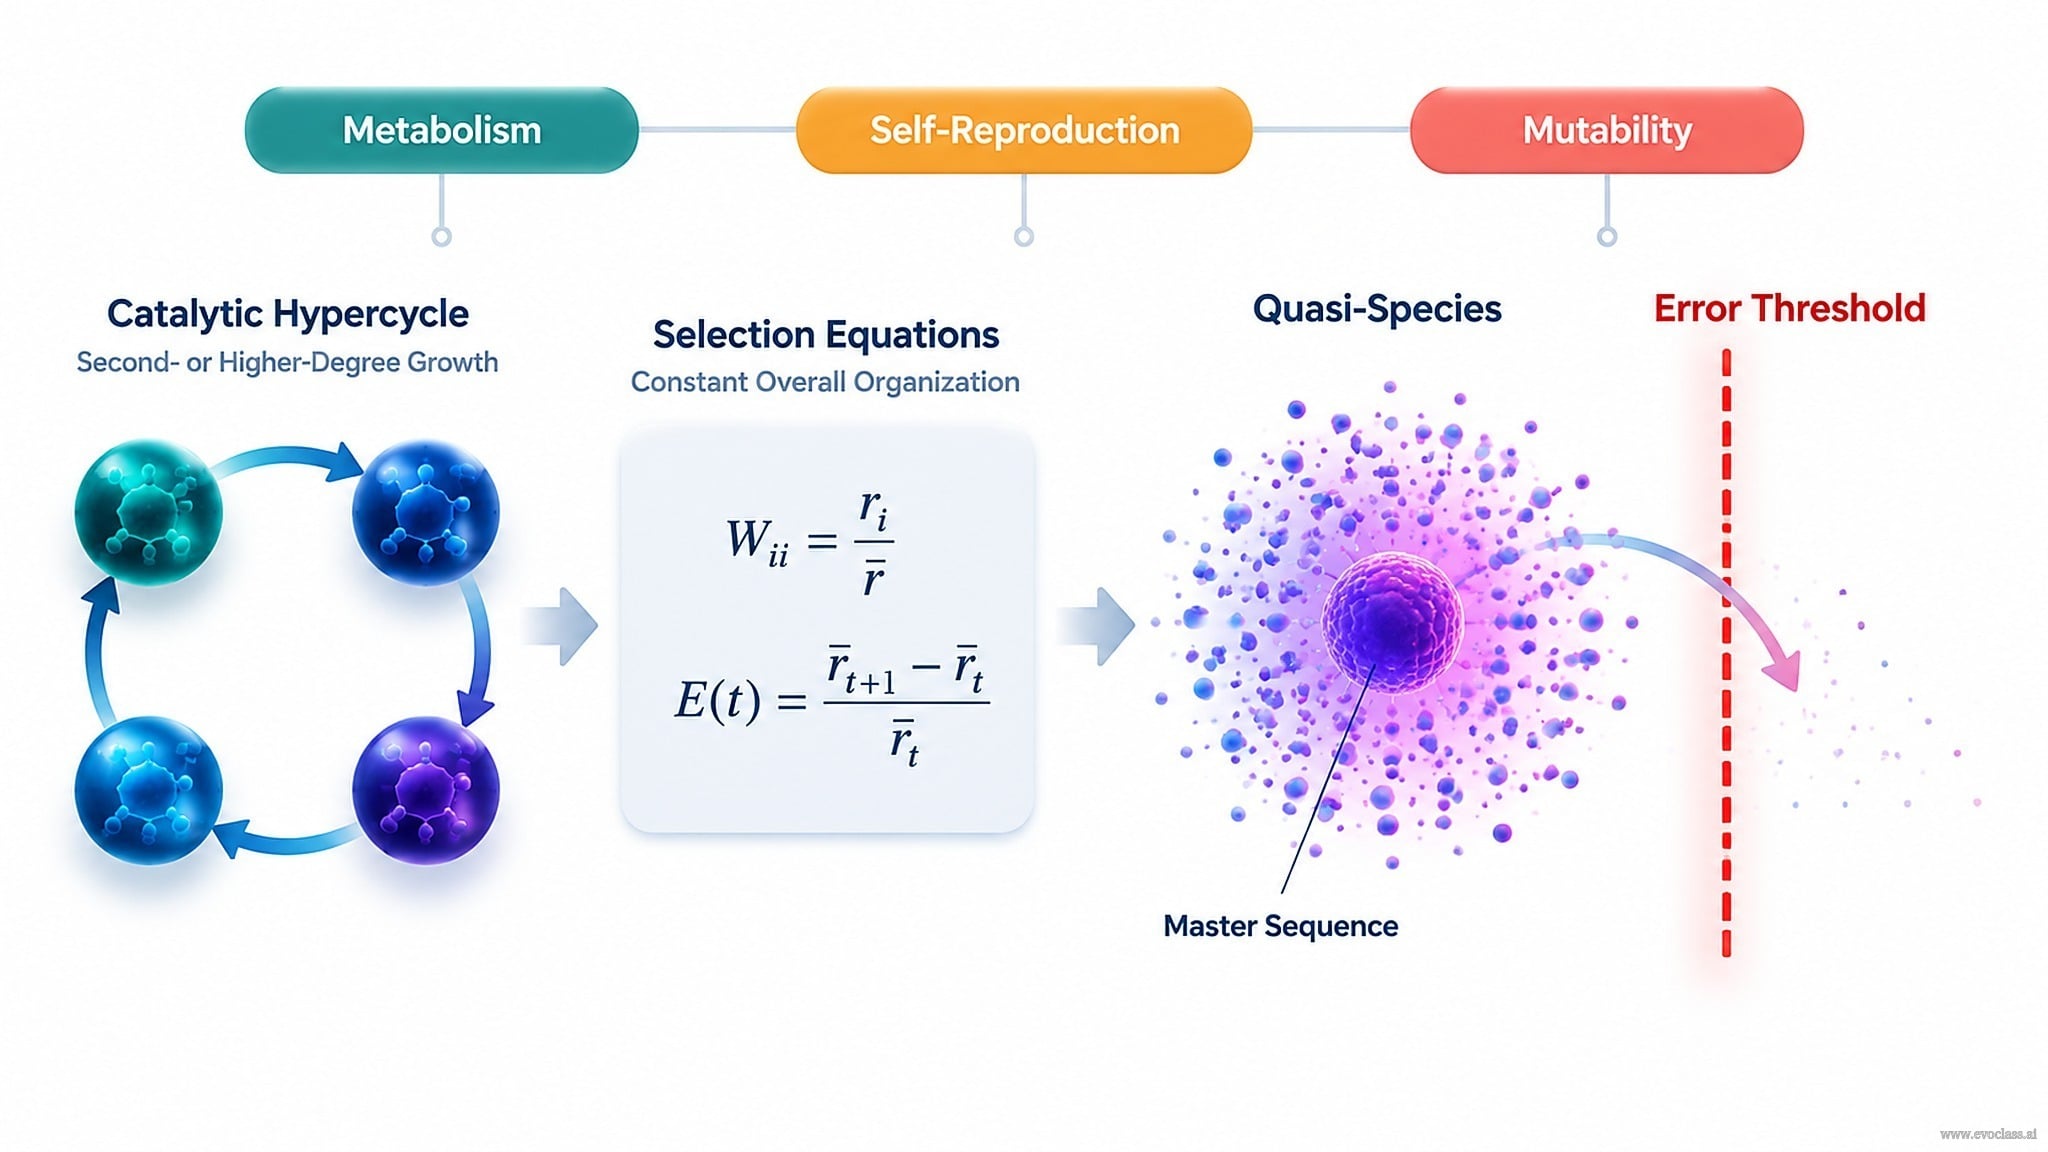
本課以生命起源理論中的核心問題開場:一組自我複製的分子如何能在沒有既有細胞機制的情況下產生 分子選擇 ?本課所發展出的答案是 催化超循環:一種自我複製單元所形成的環狀連結,其中每個單元的複製都受到循環中另一位成員的催化支持。其結果是集體自組織,而非一群彼此獨立的複製者。
三種成長組織
- 單純催化成長:外部催化劑促進模板的複製,但催化劑本身並非由同一迴路所產生。其成長定律不具自我放大性。
- 自催化成長:分子催化自身的複製或其同類的複製。成長率中有一項與複製者濃度的一次方成正比——即一次自我放大。
- 超循環成長:複製被組織為閉合循環 A → B → C → … → A。由於每位成員都是在另一位成員的催化下產生,整體成長取決於至少兩個濃度的乘積。這正是催化超循環屬於 二次或更高次系統的原因。
這項區別之所以重要,是因為唯有超循環組織能將自我複製與集體的非線性動力學耦合起來,從而在分子層次支持選擇。
達爾文前提
分子選擇的發生必須滿足三項條件:
- 代謝:維持組織狀態遠離平衡所需的自由能與物質來源。
- 自我繁殖:單元增殖的能力,使有利的變異型能增加數量。
- 可突變性:可遺傳的變異,否則選擇便無所依託。
這三項前提屬於邊界條件:它們本身並不指定定量動力學,但界定了達爾文式描述具有意義的範圍。
總體組織恆定下的選擇方程式
當複製者的總濃度保持恆定時,各頻率
其中 Wii 為 選擇值 ,即複製者類型 i 的選擇值,已納入其複製率與降解率。 E(t) 為 平均超額生產力,即各選擇值以族群為權重的平均值。當某類型的 W_ii 超過 E(t) 時,其頻率上升;低於 E(t) 時則下降。總體組織恆定的條件使選擇成為一種相對比較,而非絕對的成長競賽。
突變—選擇平衡與準物種
真實的複製過程容易出錯。突變—選擇平衡並不會產生單一具主導性的野生型序列;取而代之的是產生 準物種,即圍繞主序列、由突變序列所構成的有序分布。因此,野生型是同源序列雲中最可能的成員,而非選擇的唯一目標。當主序列的選擇優勢與背離它的突變流達到平衡時,該分布便趨於穩定。
錯誤閾值
準物種只有在每次複製的突變率足夠低時才能存續。一旦超過 錯誤閾值,主序列便無法可靠地傳遞其資訊,突變雲會去定域化,整體的有序分布也將崩解為突變隨機化的狀態。這限制了超循環或準物種所能穩定維持的資訊量。開場的路線圖——催化循環 → 選擇方程式 → 準物種 → 錯誤閾值——因此將分子自組織連結到達爾文演化在分子層次的根本資訊上限。
邊界條件
代謝、自我繁殖與可突變性是必備前提,而非可有可無的標籤。只要缺少其中一項,即使化學循環仍持續運轉,選擇方程式也將失去其達爾文式詮釋。
催化超循環路線圖一個閉合的催化超循環引向含有選擇值 Wᵢᵢ 與平均超額生產力 E(t) 的選擇方程式,再進入準物種突變雲與錯誤閾值屏障。三項達爾文前提——代謝、自我繁殖與可突變性——界定了從分子自組織到分子選擇的過渡。
催化超循環路線圖
一個閉合的催化超循環引向含有選擇值 Wᵢᵢ 與平均超額生產力 E(t) 的選擇方程式,再進入準物種突變雲與錯誤閾值屏障。三項達爾文前提——代謝、自我繁殖與可突變性——界定了從分子自組織到分子選擇的過渡。